
Zouhaïr Ben Amor: Quand la Terre abritait plusieurs humanités
Zouhaïr Ben Amor (Universitaire) - Nous avons pris l’habitude de parler de l’humanité au singulier. Dans une salle de classe, un livre ou une conversation, le mot semble aller de soi: les humains, ce serait nous. Pourtant, cette évidence est récente à l’échelle de notre histoire. Pendant une longue partie de la préhistoire, d’autres êtres humains marchaient ailleurs sur la Terre. Ils avaient leurs territoires, leurs contraintes, leurs manières de vivre. Certains ont rencontré nos ancêtres. Et quelques-uns, disparus comme populations distinctes, ont laissé dans notre génome une présence que nous commençons seulement à comprendre.
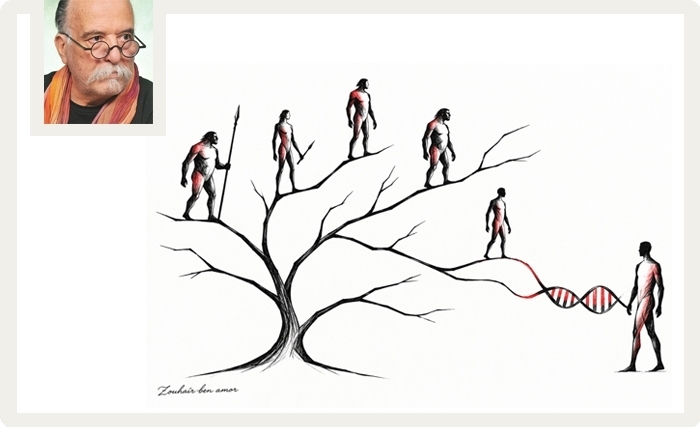
L’image scolaire d’une file de silhouettes, du primate courbé à l’homme debout, a beaucoup contribué à brouiller cette histoire. On y voit une succession bien rangée, presque une marche triomphale. Or l’évolution humaine ressemble davantage à un paysage de branches, avec des voisinages, des séparations et des rencontres. Des lignées ont persisté longtemps; d’autres nous sont connues par quelques dents. Notre espèce n’occupait pas seule ce paysage. Elle n’en constituait pas non plus, à chaque moment, le centre évident.
Une précision avant de compter
On lit souvent qu’au moins neuf espèces humaines auraient vécu simultanément. La formule frappe, mais elle demande une correction. Plusieurs lignées ont effectivement coexisté; en revanche, une liste de neuf noms ne prouve pas que neuf espèces distinctes étaient présentes au même instant. Leurs périodes d’existence ne se recouvrent pas toutes, et leurs classifications restent discutées. Harvati et Reyes-Centeno (2022) montrent combien les fossiles du Pléistocène résistent aux catégories trop nettes. La diversité est certaine. Son décompte exact l’est beaucoup moins.
Il faut aussi distinguer les hominidés, famille qui comprend les humains et les autres grands singes actuels, des hominines de notre lignée évolutive. Homo sapiens est aujourd’hui le seul représentant vivant du genre Homo, mais pas le seul hominidé. Cette différence de vocabulaire évite de faire disparaître, par une phrase imprécise, chimpanzés, bonobos, gorilles et orangs-outans. Elle rappelle surtout qu’une réflexion accessible ne gagne rien à sacrifier la justesse. On peut raconter simplement une histoire complexe, à condition de ne pas la rendre fausse.
Pour parcourir cette diversité, neuf noms ou ensembles seront donc évoqués: sapiens, Néandertal, les Dénisoviens, erectus, naledi, floresiensis, luzonensis, heidelbergensis et rhodesiensis. Cette présentation n’en fait pas neuf espèces indépendantes unanimement reconnues. Les deux derniers regroupements se chevauchent selon les auteurs; les Dénisoviens ont d’abord été identifiés comme lignée génétique. Quant à Homo antecessor, souvent ajouté aux listes populaires, ses représentants connus sont bien antérieurs à notre espèce. Le placer parmi les contemporains de sapiens serait confondre ancienneté et coexistence.
L’Afrique et les commencements de sapiens
Commençons par nous, sans nous accorder une place privilégiée. Homo sapiens prend forme en Afrique. Les fossiles de Jebel Irhoud, au Maroc, datés d’environ 315 000 ans, avec une marge d’incertitude, documentent une phase ancienne de notre lignée. Leur combinaison de traits montre que l’apparition de notre anatomie ne fut pas un événement instantané. Un visage relativement moderne pouvait accompagner une forme crânienne encore différente de la nôtre. La publication de Hublin et ses collègues (2017) a profondément élargi notre regard sur ces commencements.
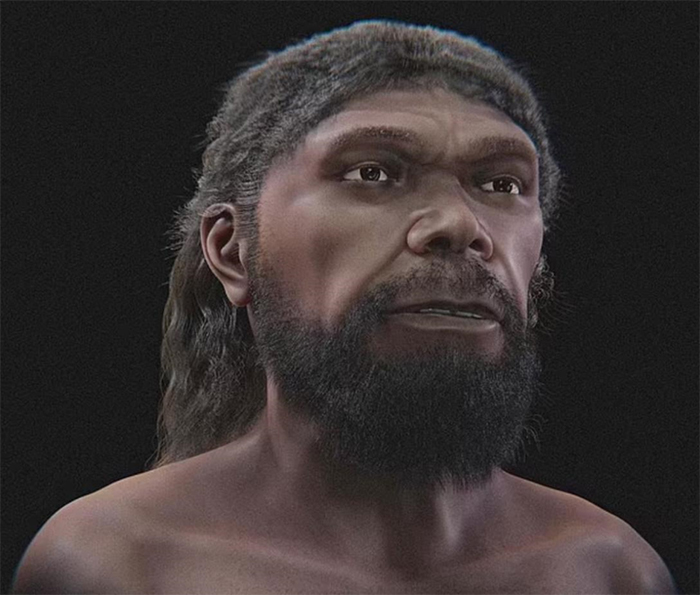 Homo sapiens
Depuis le Maghreb, cette découverte possède une résonance particulière. Elle replace l’Afrique du Nord dans une histoire longtemps racontée presque exclusivement depuis l’Afrique orientale. Mais elle ne justifie aucun nouveau récit de propriété nationale. Un fossile trouvé au Maroc ne permet pas d’attribuer l’humanité à un pays contemporain. Les frontières de nos États ne disent rien des territoires de ces populations. L’enjeu scientifique est une origine africaine plus vaste, faite de populations diversement reliées, plutôt qu’un berceau unique dont on pourrait fièrement garder la clé.
Cette Afrique ancienne n’était pas uniforme. Les environnements changeaient; des passages devenaient possibles, puis se refermaient. Les populations ne constituaient ni un bloc compact ni des unités définitivement isolées. Il reste difficile de reconstruire tous leurs échanges. Mais envisager sapiens dans cette diversité oblige déjà à modifier notre récit: nous sommes issus d’une histoire collective, continentale, dont les fossiles disponibles ne livrent que des fenêtres. Nos origines ne tiennent pas dans un point posé sur une carte.
Au sud du continent vivait Homo naledi, connu dans le réseau de grottes de Rising Star, en Afrique du Sud. Les restes de la chambre de Dinaledi sont datés d’environ 335 000 à 236 000 ans. Cette chronologie place donc naledi dans la même grande période que les premiers sapiens. Son petit cerveau et sa combinaison de caractères anatomiques anciens et plus proches des nôtres ont surpris. Nous avions tendance à supposer qu’une anatomie apparemment ancienne devait appartenir à une époque nécessairement très reculée.
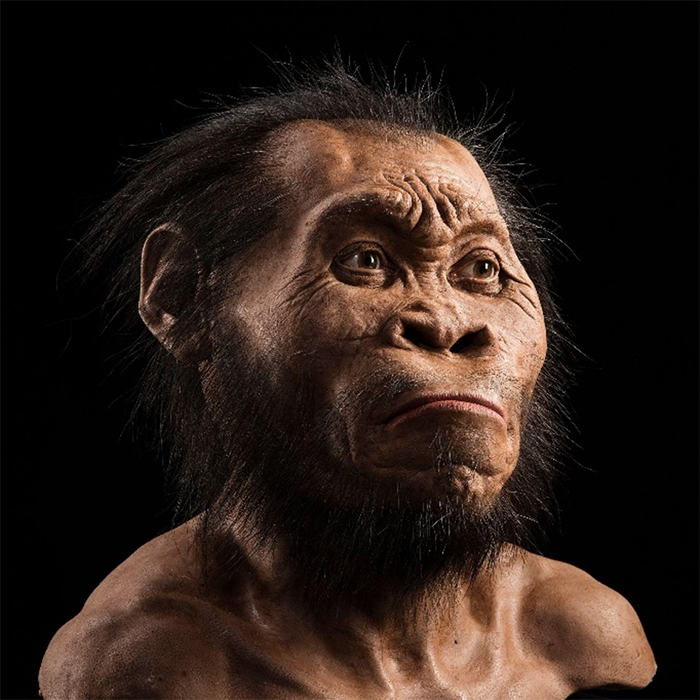 Homo naledi
Naledi rappelle qu’une lignée peut conserver certains caractères longtemps. Il ne représente pas un sapiens inachevé, attendant de devenir nous. Il appartient à sa propre histoire. Sa distribution connue reste limitée; aucune contribution génétique à l’humanité actuelle n’est démontrée. Les interprétations de ses comportements, notamment funéraires, font débat et demandent de la prudence. Le plus solide, ici, est déjà considérable: des humains très différents partageaient l’Afrique de cette époque, sans que nous puissions affirmer qu’ils se rencontraient effectivement (Harvati et Reyes-Centeno, 2022).
À côté de ces deux lignées, les noms Homo heidelbergensis et Homo rhodesiensis désignent une partie des humains du Pléistocène moyen. Le premier fut établi à partir d’une mandibule découverte à Mauer, en Allemagne. Il a ensuite servi, dans certaines classifications, à regrouper des fossiles européens et africains. D’autres chercheurs le réservent davantage à l’Europe, où plusieurs populations anciennes présentent des liens avec l’histoire néandertalienne. Sa géographie dépend donc en partie de la définition retenue. Une carte sans cette réserve donnerait une certitude trompeuse.
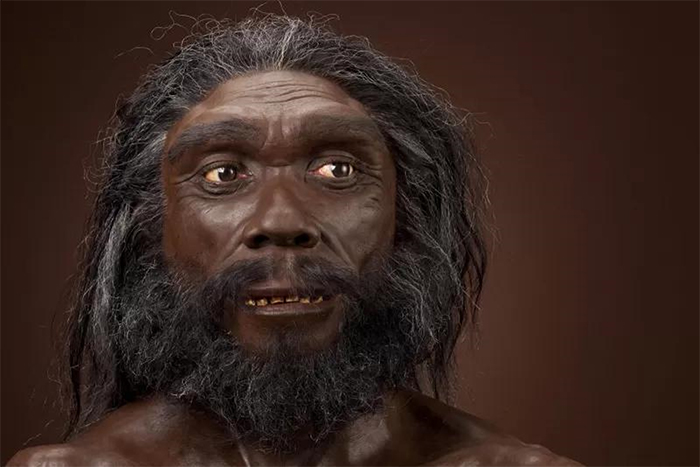 Homo heidelbergensis
Homo rhodesiensis renvoie notamment au crâne de Kabwe, en Zambie, anciennement Broken Hill, dont l’âge est estimé autour de 300 000 ans. Des fossiles africains robustes ont été rapprochés de cet ensemble. Cependant, certains auteurs les intègrent à heidelbergensis, tandis que d’autres proposent des découpages différents. Compter heidelbergensis et rhodesiensis comme deux espèces toujours parfaitement séparées revient à transformer une discussion scientifique en résultat acquis. Ce qui demeure, derrière les noms, c’est une diversité africaine réelle, dont les relations avec sapiens restent difficiles à préciser.
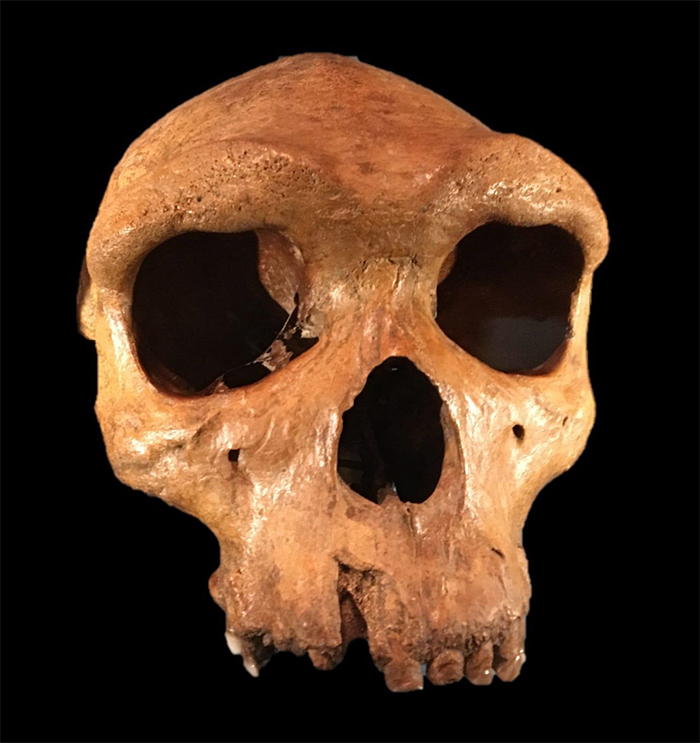 Homo rhodesiensis
Des Européens et des Asiatiques que nous redécouvrons
Homo neanderthalensis occupait l’Europe et une partie de l’Asie occidentale et centrale. Les Néandertaliens avaient des corps généralement robustes et une anatomie particulière. Ils vivaient dans des environnements variables, souvent exigeants, et leur histoire s’étend sur plusieurs centaines de milliers d’années avant leurs dernières populations connues, autour de 40 000 ans. Il faut se garder d’en faire un peuple immobile, entièrement enfermé dans le froid. Leur vaste distribution et leur durée d’existence impliquent des situations diverses, que le mot «Néandertal» tend parfois à effacer.
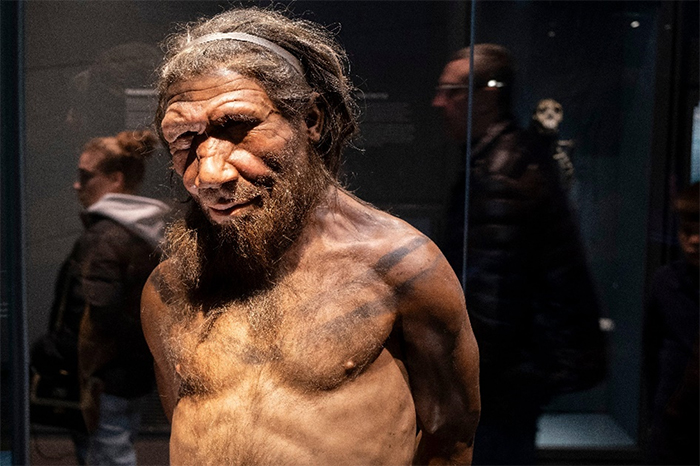 Homo neanderthalensis
Longtemps, on les a représentés comme des brutes. Cette caricature arrangeait notre amour-propre : plus le cousin était grossier, plus notre excellence paraissait naturelle. Les recherches ont corrigé ce portrait. Les techniques, les stratégies de subsistance et les indices de relations sociales témoignent de capacités que l’ancien cliché ne pouvait accueillir. Les comportements précis doivent être évalués site par site. Mais aucune lecture sérieuse ne permet de réduire leur disparition à une simple insuffisance intellectuelle. Survivre longtemps constitue déjà un fait évolutif qui mérite d’être pris au sérieux.
Plus à l’est, les Dénisoviens ont d’abord été reconnus grâce à l’ADN ancien provenant de la grotte de Denisova, dans l’Altaï sibérien. Leur identification a inversé une habitude: une lignée pouvait être distinguée génétiquement avant que son apparence soit bien connue. Des découvertes sur le plateau tibétain et ailleurs en Asie ont ensuite élargi leur géographie. Parler des Dénisoviens ne revient donc pas à désigner quelques habitants d’une grotte sibérienne. Les données suggèrent plusieurs populations, adaptées à des milieux différents, sur un espace considérable (Ongaro et Huerta-Sanchez, 2024).
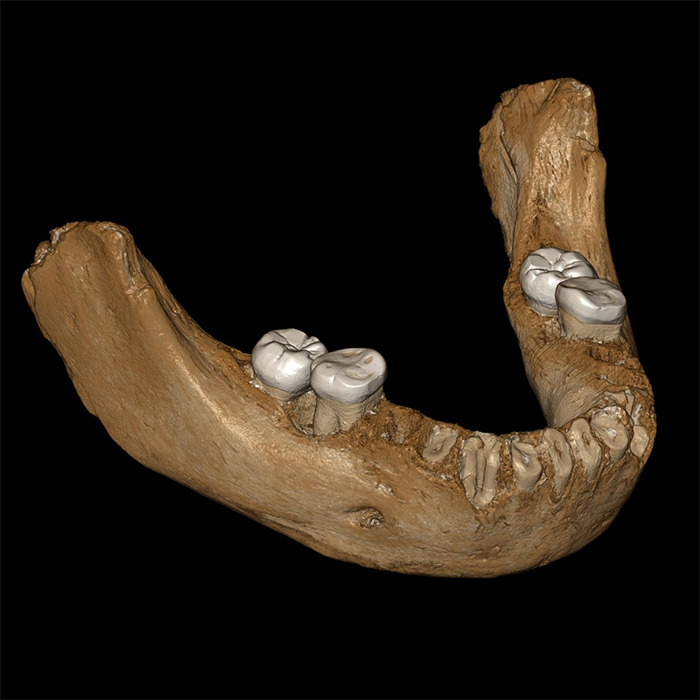 Dénisoviens
Les résultats publiés en 2025 sur le crâne de Harbin, dans le nord-est de la Chine, sont particulièrement instructifs. Ce fossile, âgé d’au moins 146 000 ans et auparavant attribué à Homo longi, a fourni des protéines anciennes qui soutiennent son appartenance à une population dénisovienne (Fu et al., 2025). Un nom spectaculaire ne garantit donc pas une lignée supplémentaire indépendante. Ajouter longi aux Dénisoviens pour augmenter le nombre d’espèces serait désormais particulièrement imprudent. Les découvertes peuvent rapprocher des ensembles que l’on croyait séparés, aussi bien qu’en révéler de nouveaux. Homo erectus nous conduit encore plus loin dans le temps et vers l’Asie orientale et du Sud-Est. Au sens large, ce nom rassemble une histoire très longue, dont les débuts africains sont parfois distingués sous le nom Homo ergaster. Les erectus asiatiques sont notamment connus en Chine et à Java. Leur crâne bas et allongé contraste avec le nôtre, mais leur corps témoigne d’une bipédie bien établie. Leur remarquable durée d’existence suffit à déranger une vision où chaque forme serait rapidement remplacée par une autre prétendument supérieure.
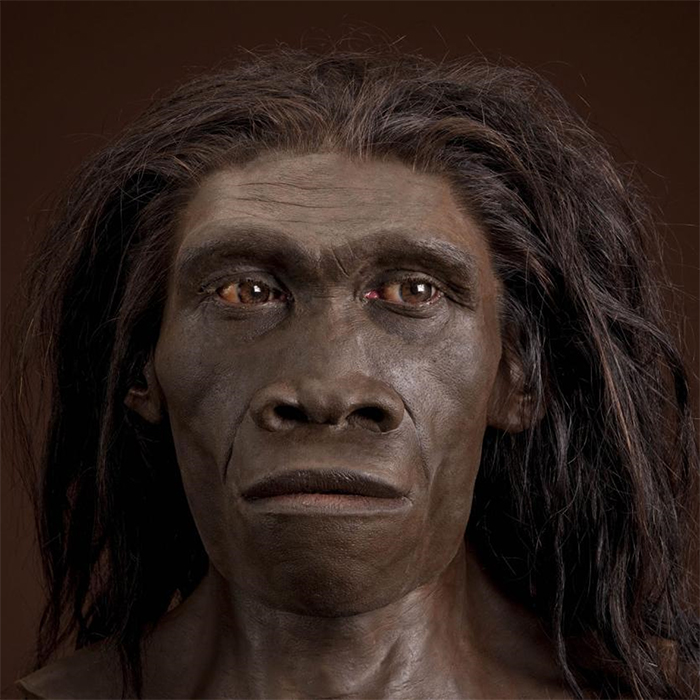 Homo erectus
À Ngandong, sur l’île de Java, les derniers fossiles connus d’erectus se situent entre environ 117 000 et 108 000 ans. Pendant cette période, sapiens existait déjà en Afrique et ailleurs. Cette contemporanéité à grande distance ne démontre toutefois aucune rencontre entre les populations concernées. La dernière présence fossile connue n’est pas non plus la date certaine d’une extinction mondiale. Nous disposons d’archives incomplètes, conservées de façon inégale. Entre ce que les terrains révèlent et ce qui s’est réellement déroulé, il reste toujours une part de silence.
Les îles et les chemins imprévus de l’évolution
Sur Flores, en Indonésie, Homo floresiensis a révélé une autre manière d’être humain. Sa petite taille, voisine d’un mètre pour l’individu le mieux connu, et son faible volume cérébral ont suscité de nombreuses discussions. Pourtant, ses particularités ne se laissent pas réduire à une caricature de sapiens malade ou diminué. Les îles peuvent favoriser des trajectoires évolutives singulières. Leurs ressources, leur isolement et leurs communautés animales diffèrent de ceux des continents. Mais reconnaître ce contexte ne signifie pas que tous les détails de l’origine de floresiensis soient résolus.
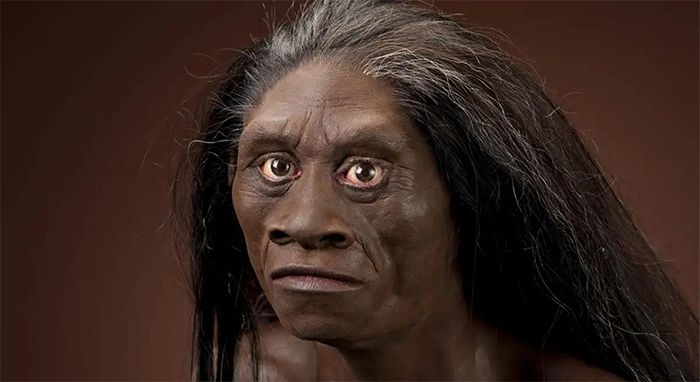 Homo floresiensis
À Liang Bua, ses restes sont datés d’environ 100 000 à 60 000 ans; des outils qui lui sont attribués prolongent la documentation jusqu’à environ 50 000 ans. Les premières annonces d’une survie beaucoup plus récente ont été révisées. Cet exemple devrait nous apprendre quelque chose sur la science: corriger une date ne ruine pas une découverte, cela améliore sa portée. La rencontre de floresiensis avec sapiens demeure une question ouverte. Aucun héritage génétique identifiable de cette espèce dans les populations actuelles n’est établi.
Aux Philippines, sur l’île de Luçon, la grotte de Callao a livré les restes attribués à Homo floresiensis. Les fossiles connus se situent autour de 67 000 à 50 000 ans. Des dents et des éléments des mains et des pieds présentent une association particulière de caractères. L’échantillon reste trop limité pour reconstruire avec assurance toute son apparence, sa taille ou son mode de vie. Il serait tentant de lui donner immédiatement un visage et une biographie. La rigueur consiste parfois à accepter qu’un humain ancien demeure partiellement inconnu. 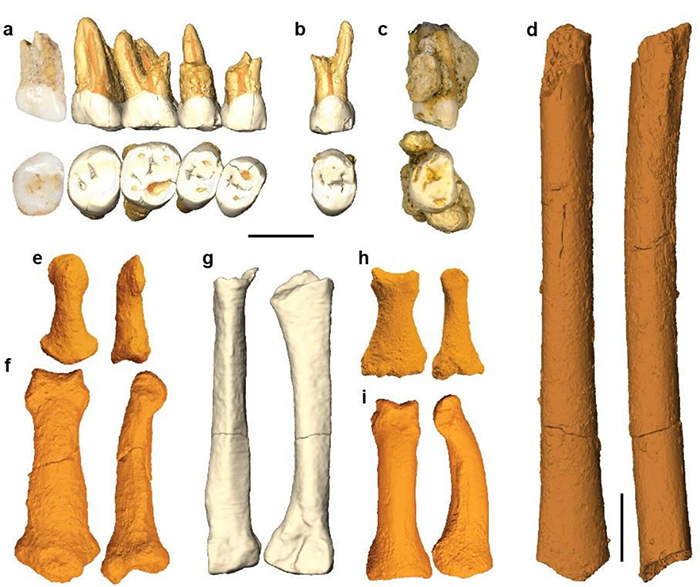
Homo floresiensis
Floresiensis et luzonensis rendent l’Asie insulaire incontournable. Ils rappellent que l’histoire humaine ne se résume pas au trajet Afrique-Europe, si souvent privilégié dans les récits familiers. Ces populations existaient pendant que sapiens poursuivait sa propre histoire. Elles ne constituent pas pour autant des étapes de notre formation. Ce sont des branches distinctes, dont les parentés précises restent discutées. L’évolution ne produit pas seulement des ancêtres destinés à nous expliquer ; elle produit aussi des existences qui valent d’être comprises pour elles-mêmes.
Des disparus qui ne sont pas entièrement absents
La génétique ancienne a changé notre manière de penser les disparitions. Des fragments néandertaliens persistent dans le génome de nombreuses populations actuelles, notamment celles dont les ancêtres ont une importante histoire hors d’Afrique. Les proportions individuelles sont généralement faibles, souvent autour de 1 à 2 %, et varient. Des migrations ultérieures ont aussi ramené de tels fragments en Afrique. On ne saurait donc tracer une frontière simple entre continents prétendument métissés et continent prétendument intact. La circulation humaine est plus ancienne et plus compliquée que nos catégories.
L’héritage dénisovien est particulièrement marqué dans certaines populations d’Océanie et présent, en proportions variables, dans plusieurs populations asiatiques. La synthèse d’Ongaro et Huerta-Sanchez (2024) décrit des indices d’au moins trois épisodes d’introgression provenant de populations dénisoviennes distinctes. L’introgression désigne ici la transmission durable de fragments génétiques après des croisements. Ce mot technique recouvre une réalité humaine très simple: des lignées que nous distinguons aujourd’hui ont eu des descendants communs. Certaines frontières biologiques existaient sans être absolument infranchissables.
Des variants hérités de ces rencontres ont pu favoriser certaines adaptations. L’association entre une ascendance dénisovienne et l’adaptation à l’altitude de populations tibétaines en offre un exemple étudié. D’autres fragments ont été éliminés ou réduits par la sélection; tous n’étaient ni utiles ni nuisibles de manière uniforme. Il faut résister au récit du gène miraculeux. Un fragment génétique agit dans un organisme, une population et un environnement. Il ne confère pas, à lui seul, une identité culturelle ou une valeur humaine.
Nous ignorons, pour plusieurs autres lignées, si elles ont contribué à notre patrimoine génétique. L’absence d’ADN ancien exploitable, notamment dans des milieux défavorables à sa conservation, limite les conclusions. Des modèles peuvent suggérer des échanges avec des populations non identifiées ; ils ne permettent pas d’attribuer automatiquement ces traces à naledi, erectus ou rhodesiensis. Un nom fossile et un signal génétique ne se raccordent pas par simple intuition. Garder cette réserve protège le lecteur contre une histoire séduisante, mais prématurément achevée.
Que signifie rester seuls
Pourquoi sapiens est-il le seul Homo vivant ? Il n’existe pas une réponse qui conviendrait à toutes les lignées. Changements environnementaux, faibles effectifs, isolement, compétition et assimilation ont pu intervenir différemment selon les lieux. Leur poids respectif reste discuté. Pour Néandertal, le métissage montre déjà qu’une disparition peut comporter une intégration partielle. Pour d’autres populations, les preuves sont beaucoup plus pauvres. Rien n’autorise à transformer l’ensemble en victoire programmée de l’intelligence sur la déficience. Notre survie n’est pas une démonstration morale.
Cette histoire mérite une place plus juste dans l’enseignement. Montrer quelques territoires, expliquer les chevauchements chronologiques, distinguer ce que l’on sait de ce que l’on suppose : voilà qui forme mieux l’esprit qu’une procession de silhouettes. Elle nous apprend aussi à regarder autrement nos différences actuelles. Tous les humains vivants appartiennent à Homo sapiens. Les fragments hérités de lignées anciennes ne créent aucune hiérarchie entre eux. La diversité de nos ascendances décrit des histoires ; elle ne distribue ni droits ni dignités.
Je trouve dans cette ancienne pluralité une invitation à la modestie. Nous sommes seuls aujourd’hui dans notre genre, après avoir été entourés de proches différents. Certains ne subsistent que dans des os ; d’autres nous accompagnent aussi dans nos cellules. Il n’est pas nécessaire de leur prêter nos émotions pour reconnaître la profondeur de cette présence. Quand nous disons « nous », nous nommons une humanité actuelle, mais aussi une histoire de rencontres dont nous sommes les héritiers. Reste à savoir ce que nous ferons de cet héritage, sur une Terre que nous continuons à partager avec tant d’autres formes de vie.
| Espèce ou groupe | Répartition géographique connue | Période approximative documentée | Particularités physiques | Traces génétiques chez les humains actuels |
| Homo sapiens | Origine africaine, puis expansion mondiale | Depuis environ 300 000 ans | Squelette généralement gracile, visage réduit, menton marqué; crâne plus globulaire chez les formes récentes | Notre espèce, qui conserve aussi des fragments hérités de certaines lignées anciennes |
| Homo neanderthalensis | Europe, Asie occidentale et centrale | Environ 400 000 à 40 000 ans | Corps robuste, membres relativement courts, arcades sourcilières fortes, crâne allongé | Oui: souvent autour de 1 à 2 % chez les personnes ayant une importante ascendance hors d’Afrique |
| Dénisoviens | Sibérie, plateau tibétain et autres régions d’Asie | Présence attestée à différentes périodes du Pléistocène moyen et supérieur | Anatomie encore incomplètement connue; certains fossiles présentent des dents et des mâchoires robustes | Oui: proportions variables, particulièrement importantes dans certaines populations d’Océanie |
| Homo erectus | Afrique et Asie au sens large; notamment Chine et Indonésie | Environ 1,9 million à 110 000 ans, selon les classifications | Crâne bas et allongé, os crâniens épais, arcades marquées; bipédie bien établie | Aucune contribution directement identifiée avec certitude |
| Homo naledi | Afrique du Sud, grottes de Rising Star | Fossiles datés de 335 000 à 236 000 ans | Petit cerveau ; combinaison de caractères anciens et plus modernes dans les mains, les pieds et le squelette | Aucune contribution démontrée |
| Homo floresiensis | Île de Flores, Indonésie | Restes connus d’environ 100 000 à 60 000 ans; outils attribués jusqu’à environ 50 000 ans | Très petite taille, autour d’un mètre pour l’individu le mieux connu; petit cerveau | Aucune contribution démontrée |
| Homo luzonensis | Île de Luçon, Philippines | Environ 67 000 à 50 000 ans | Association particulière de caractères dentaires et osseux; taille et volume cérébral inconnus | Aucune contribution démontrée |
| Homo heidelbergensis | Europe; également Afrique dans certaines classifications | Souvent situé entre 700 000 et 200 000 ans | Crâne et mâchoires robustes, fortes arcades sourcilières; définition variable selon les chercheurs | Pas de contribution directement isolée sous ce nom |
| Homo rhodesiensis | Afrique; notamment Kabwe, Zambie | Crâne de Kabwe âgé d’environ 300 000 ans | Crâne massif, face large, arcades sourcilières très développées | Aucune contribution directement démontrée sous ce nom |
Zouhaïr Ben Amor
Universitaire
Bibliographie
• Hublin, J.-J., et al. (2017). New fossils from Jebel Irhoud, Morocco and the pan-African origin of Homo sapiens. Nature, 546, 289–292.
• Harvati, K., et Reyes-Centeno, H. (2022). Evolution of Homo in the Middle and Late Pleistocene. Journal of Human Evolution, 173, 103279.
• Ongaro, L., et Huerta-Sanchez, E. (2024). A history of multiple Denisovan introgression events in modern humans. Nature Genetics, 56, 2612–2622.
• Fu, Q., et al. (2025). The proteome of the late Middle Pleistocene Harbin individual. Science, 389, 704–707.